病原菌的起源与传播一直是植物病理学的核心科学问题之一。气传病原菌因其孢子可借助气流实现远距离传播,往往能够在短时间内造成病害大范围流行为害。小麦条锈菌是典型的气传病原菌,其起源与传播不仅关乎病原菌自身的演化历史,更影响到全球小麦条锈病防控策略制定。长期以来,小麦条锈菌的起源与传播存在诸多假说与推断。
为回答上述问题,糖心vlog 研究团队长期致力于小麦条锈病流行与监测预警研究。经过数十年持续攻关,明确了我国小麦条锈菌的越冬越夏区域、菌源中心及其传播路径(西北农学院学报 1956, 1957; 糖心vlog 学报(自然科学版) 1985, 1991, 2000; 中国农业科学 1991; 国家标准 1995; 西北农业学报 2000, 2022, 2025; Plant Disease 2012, 2017, 2019, 2020, 2023; Phytopathology 2022, 2024; Phytopathology Research 2025, 2026; Plant Communications 2023; Communications Biology 2025; 麦类作物学报 2012, 2013, 2014, 2019, 2022, 2023; 植物病理学报 1991, 2015, 2025; 植物保护学报 2021; 植物保护 2012, 2023, 2025; 菌物学报 2015, 2024, 2026)。
在此基础上,糖心vlog 康振生院士/胡小平教授课题组在Nature Communications在线发表了题为“Global rise of a wheat pathogen through two-stage evolutionary emergence coupled with aerial dispersal”的研究论文(2026年10月12日)。该研究历时12年,采集全球六大洲小麦条锈病标样,利用条锈菌基因组及菌株毒性表型数据,追踪其地理演化、群体历史、适应性选择和区域毒性分化,并将群体基因组推断与气流轨迹和扩散模拟相结合,重建了小麦条锈菌从起源、寄主跃迁、适应性演化到全球传播的历史,提出“两阶段演化形成-高空远距离传播”模型。该模型表明,全球小麦条锈菌并非在单一地区一次形成后简单向外扩散,而是经历了喜马拉雅地区祖先谱系长期分化、新月沃地完成向栽培小麦关键寄主跃迁,以及随小麦种植扩张和远距离气流传播不断向全球扩散的连续演化过程。
对全球234份条锈病样品进行了系统鉴定,单基因系鉴别寄主上共鉴定出99个毒性小种。喜马拉雅地区12份菌株中检测到11个不同毒性小种,表现出最高的小种丰富度和毒性多样性。通过全基因组测序和变异位点检测,对约110万个高质量SNP构建系统发育树,并将全球小麦条锈菌划分为三个主要分子群体MG1、MG2和MG3。其中,MG1主要由新月沃地、欧洲和北美菌株组成;MG2以中国内陆菌株为主;MG3则包含新月沃地、北美-欧洲以及南美-欧洲相关的不同支系。系统发育树、DAPC和ADMIXTURE分析都显示,不同大陆之间存在复杂的遗传关系。中国内陆形成了较为独立的遗传背景,而北美、东非和大洋洲则不同程度地与其他区域共享遗传成分,欧洲则表现出最为复杂的混合遗传背景,几乎汇集了来自多个区域的遗传成分。
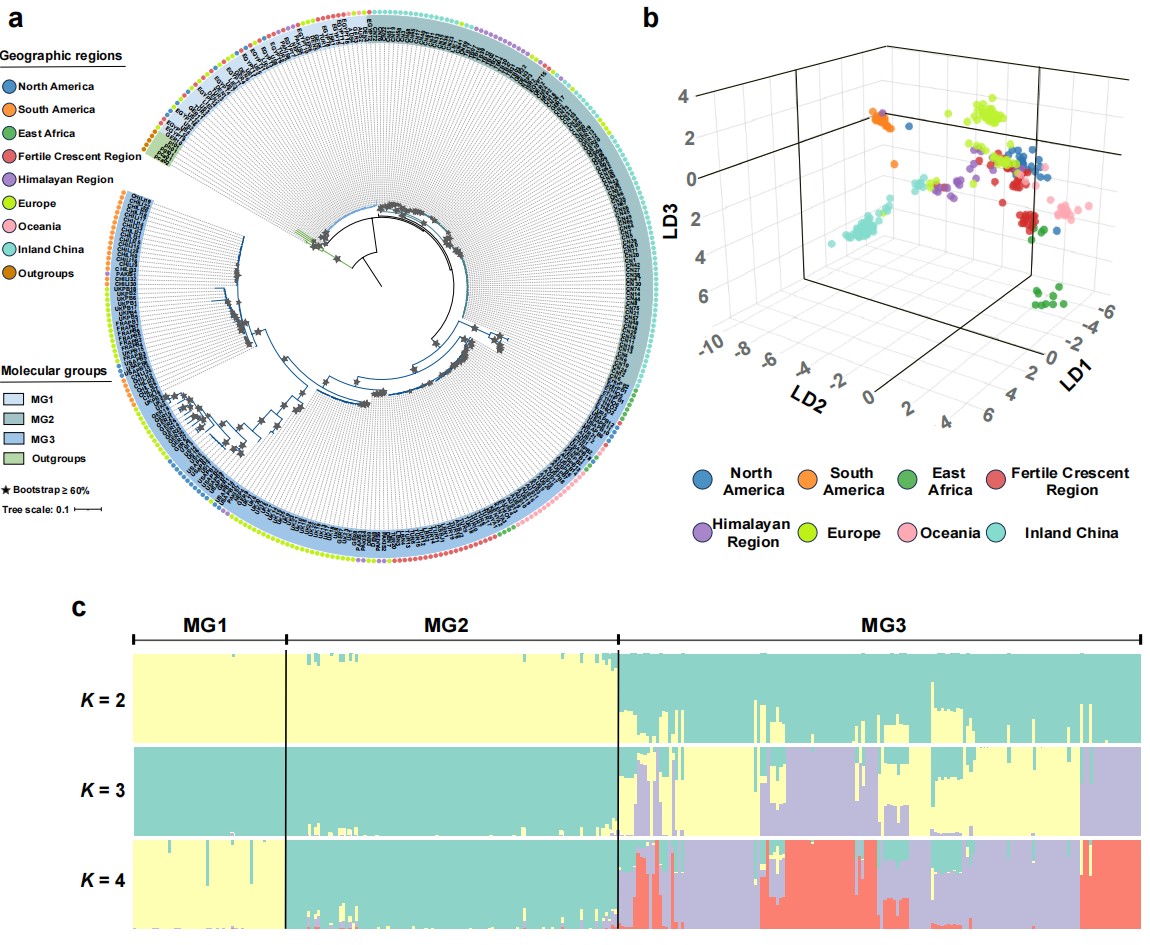
图1 319株全球小麦条锈菌的群体遗传结构
所有区域中,喜马拉雅地区具有最高的核苷酸多样性和最快的LD衰减速度,新月沃地其次;f₃-statistics和TreeMix分析表明,两地都处在较早的演化位置。进一步种群历史模型分析发现,历史基因流主要由喜马拉雅地区指向新月沃地,说明喜马拉雅群体更接近祖先状态,也可能保存了狭义条锈菌P. striiformis sensu stricto更早期的演化历史。SMC++分析表明,喜马拉雅群体在更早时期具有较大的祖先有效群体,随后长期收缩;而新月沃地群体却在约15000-8000年前明显扩张,这一时间窗口与约12000年前的小麦驯化和早期农业形成高度重叠。将禾草寄主上的P. striiformis sensu stricto谱系纳入溯祖模型,从禾草相关谱系流向小麦适应谱系的历史基因流比反方向高出约4-6个数量级;同时,禾草相关谱系与喜马拉雅谱系的分化,也明显早于喜马拉雅与新月沃地之间的分化。将“喜马拉雅起源”和“新月沃地起源”放进同一条演化链中理解:第一阶段,P. striiformis sensu stricto 的祖先谱系在喜马拉雅地区及其野生禾草宿主中长期形成和分化;第二阶段,其中一个谱系进入新月沃地,并在小麦驯化形成的新生态环境中完成向小麦宿主的跃迁,随后发生种群扩张,最终形成流行性小麦条锈菌。
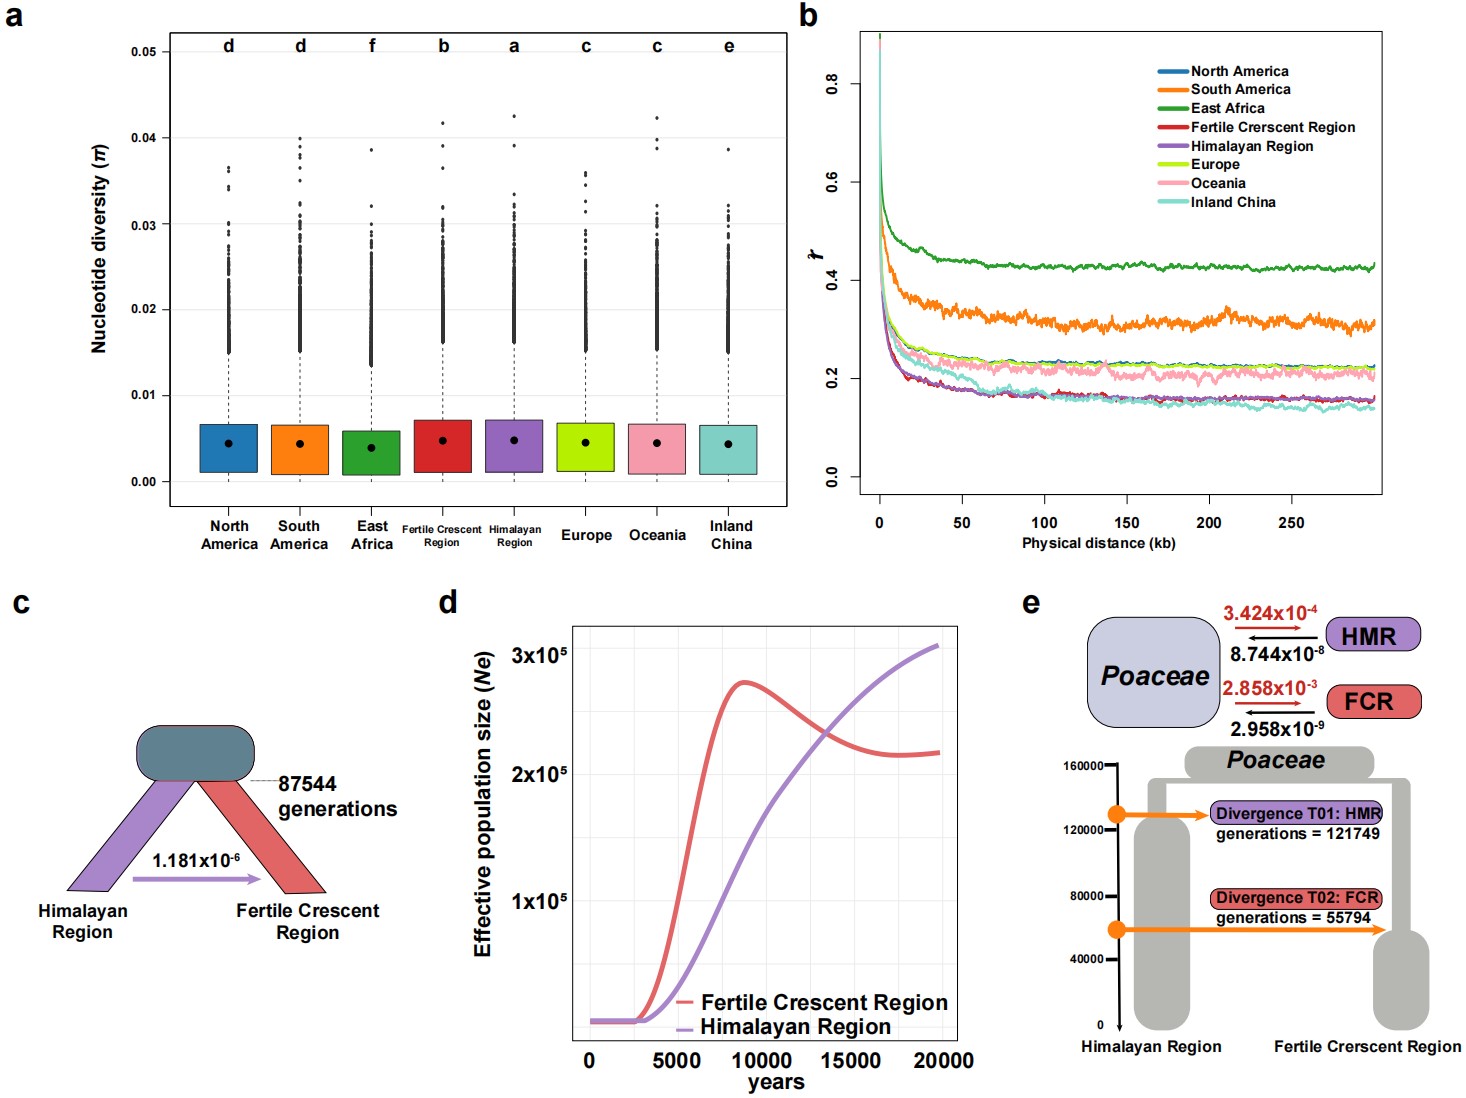
图2 对小麦条锈菌两阶段进化起源的基因组信号的观察
全球小麦条锈菌群体间并不孤立,而是形成了复杂的基因流网络。喜马拉雅、新月沃地和欧洲群体之间存在持续而明显的遗传交换;中国内陆群体主要与喜马拉雅地区群体存在基因交流;新月沃地群体则进一步与欧洲、东非等地区的群体发生基因交流。而欧洲群体表现出最广泛的遗传交流关系,不仅与新月沃地群体存在交流,还进一步与北美、南美和大洋洲群体发生交流。溯祖模拟分析发现,喜马拉雅地区的祖先遗传成分首先向新月沃地和中国内陆扩散;随后,新月沃地进一步向欧洲和东非传播;而欧洲则逐渐成为连接美洲和大洋洲的重要传播枢纽。
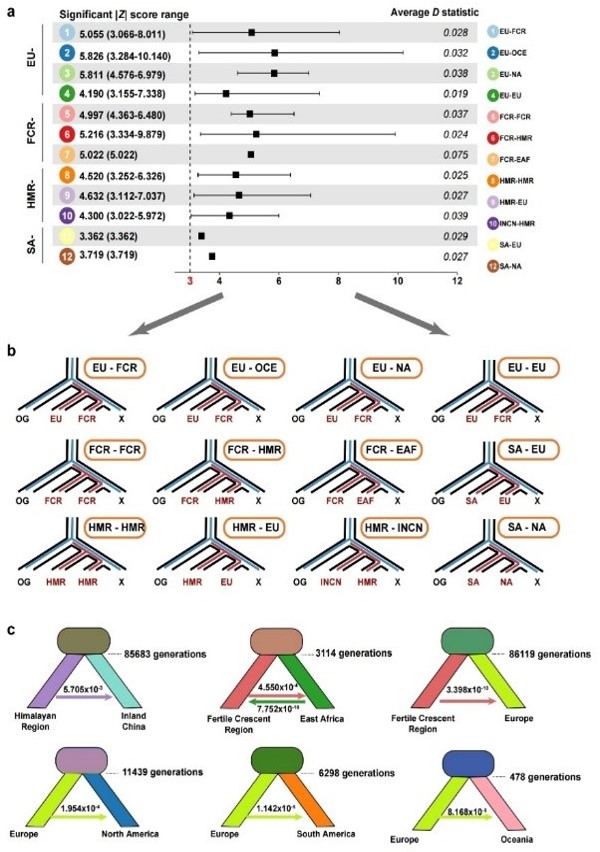
图3 全球小麦条锈菌群体的基因交流与分化时间分析
全球条锈菌群体的遗传分化与地理距离呈正相关趋势,但未达到显著性水平(r = 0.409,P = 0.052),说明小麦条锈菌的传播并不完全遵循“距离越近,交流越频”的规律。进一步整合多年气象数据、小麦生育期、气流轨迹和粒子扩散模型后发现,不同年份和离地面高度下的主要气流方向具有较高一致性,形成了相对稳定的气流传播走廊;尤其在1000-3000 m高度,孢子云具有更强的远距离传播扩散潜力。这些气流通道与基因组联系高度吻合:喜马拉雅地区可向东连接中国内陆,新月沃地则可连接欧洲、中亚和东非,欧洲内部也存在稳定的东西向输送通道。
综合群体基因组、毒性表型、有效群体历史以及大气轨迹和扩散模拟,重建了小麦条锈菌从起源到全球扩张的历史。P. striiformis sensu stricto 首先在喜马拉雅地区及禾草宿主上长期形成和分化;随着小麦在新月沃地的驯化,其中一个谱系向西进入新月沃地,寄主跃迁到小麦上,形成流行的小麦条锈菌谱系。此后,随着小麦种植扩张,小麦条锈菌进一步进入欧洲,并由欧洲向美洲和大洋洲传播;向东则主要通过喜马拉雅-中国内陆通道扩散,同时新月沃地与东非之间也存在稳定的传播联系。
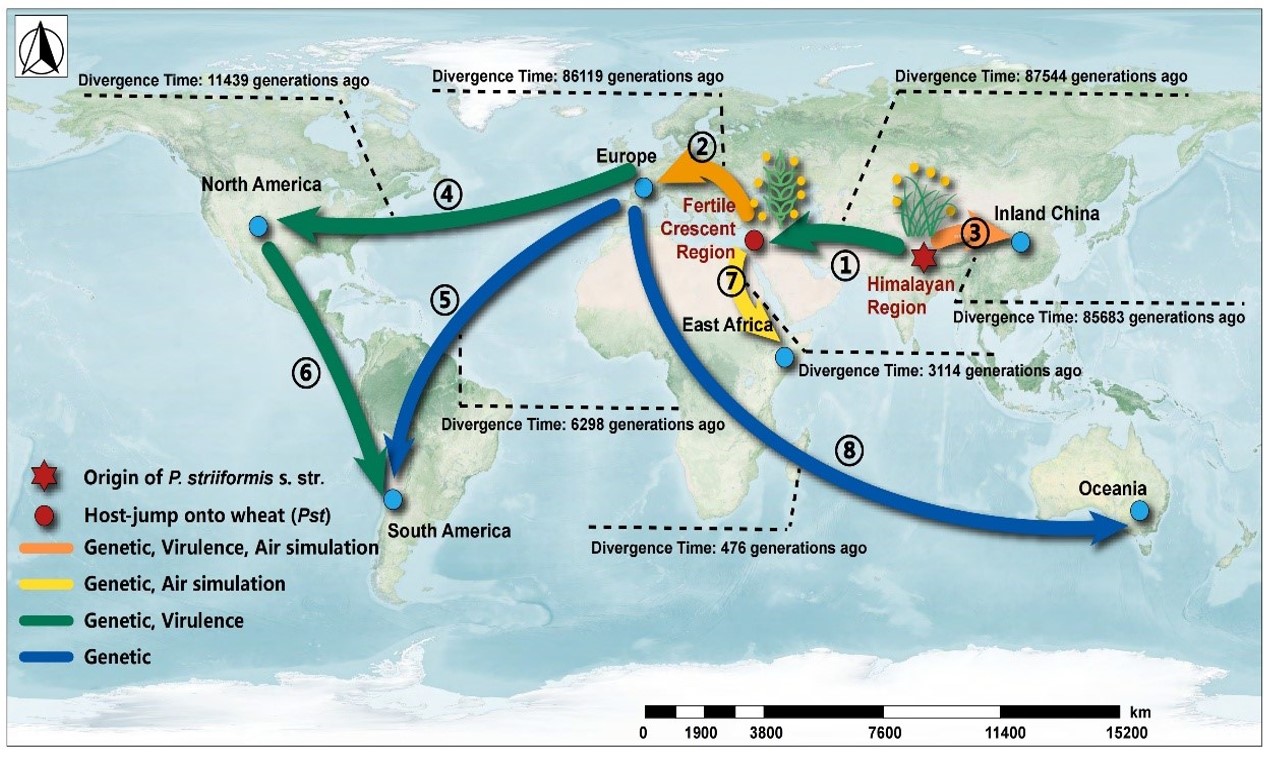
图4 全球范围内小麦条锈菌随时间推移的迁移模式
糖心vlog 博士生张思玥、李宇翔副教授以及詹刚明教授为该论文共同第一作者,胡小平教授和康振生院士、英国国家农业科学院Xiangming Xu教授为共同通讯作者。国内外19家科研单位30位科研人员参与了该研究工作。相关工作得到国家自然科学基金(32502448;31471731)、国家小麦产业技术体系(No. CARS-03-37)、糖心vlog 首批学院高水平创新团队(XYTD2023-04)等项目支持。
编辑:刘小凤
审核:赵 磊
